A pesquisa demonstra, pela primeira vez, que microrganismos conseguem persistir e acumular DNA em matrizes sólidas de regolito sob atividades de água tão baixas quanto aw = 0,34.
Até então, o limite canônico aceito de atividade de água (aw) para a replicação celular na Terra era de >= 0,585, estabelecido a partir da germinação do fungo xerofílico Aspergillus penicillioides em meios líquidos viscosos ricos em glicerol. O novo estudo prova que, dentro de matrizes minerais porosas de regolito, a dinâmica termodinâmica da água permite a atividade biológica em níveis de aridez muito superiores aos anteriormente documentados.
O Paradoxo Marciano e a Falha das Diretrizes Clássicas
O atual ambiente marciano é hiperárido. Embora sondas como Curiosity e Perseverance revelem que a atividade de água no solo pode, teoricamente, ultrapassar o limite de aw = 0,50 definido pelo painel de Proteção Planetária do COSPAR para reprodução celular, isso ocorre apenas durante a noite, quando as temperaturas despencam abaixo de 190 K (-83ºC). Durante o dia, quando as temperaturas sobem a níveis biologicamente toleráveis, a atividade de água cai para menos de 0,02.
 Imagem 1 – Umidade relativa (UR) do espaço livre (RH) a 30 °C em placas seladas de dois compartimentos. UR (%) de placas MMS-2 ao longo de 60 dias em um sistema fechado (resolução do iButton de 0,04% de UR). Água pura e sais saturados estabeleceram uma UR estável a 30 °C: água 100%, NaCl 75%, Mg(NO₃)₂·6H₂O 65%, MgCl₂ 34%, LiCl 12%. No meio MMS-2 suplementado com 5% (p/p) de MgSO₄ e utilizando água Milli-Q, a UR do espaço livre estabilizou-se em ~96% (aw ≈ 0,96) e o solo absorveu substancialmente mais água. Os valores representam a média de três réplicas; o desvio padrão (DP) foi de ±2% de UR em todos os casos. Fonte: Raghavendra, J.B., Zorzano, M. & Martin‑Torres, J. (2026)
Para simular o regolito e o microbioma sob essas pressões, os pesquisadores utilizaram o Mojave Mars Simulant 2 (MMS-2), um solo basáltico fino enriquecido com óxidos e gesso (2 a 4% de sulfato de cálcio) para mimetizar a composição marciana.
Inovação Metodológica
Uma das grandes barreiras em astrobiologia é monitorar o crescimento bacteriano em matrizes minerais opacas. Métodos tradicionais como Densidade Óptica (OD) e Contagem de Unidades Formadoras de Colônias (CFU) falham porque a matriz é opaca e menos de 2% dos microrganismos ambientais são cultiváveis em placas de ágar. Imagem 2 - Montagem experimental da incubação com MMS-2. (a) Um dos lados de uma placa de Petri de dois compartimentos foi preenchido com 1 g de MMS-2 tratado termicamente; o outro lado continha 10 mL de água Milli-Q ou uma solução salina saturada. (b) As placas foram vedadas com Parafilm e colocadas em um saco estéril antes da incubação a 30 °C em uma estufa de convecção forçada à pressão ambiente. Para cada condição e dia de amostragem, três placas replicatas foram abertas uma única vez e, posteriormente, descartadas após a extração do DNA. Fonte: Raghavendra, J.B., Zorzano, M. & Martin‑Torres, J. (2026)
A equipe contornou esse problema implementando uma abordagem independente de cultivo: a extração e quantificação de massa de DNA de fita dupla (dsDNA) via fluorometria de alta sensibilidade (Qubit 4.0). O protocolo foi previamente validado com culturas líquidas de Bacillus subtilis, onde a curva de acúmulo de DNA apresentou perfeita correlação matemática com as fases clássicas de crescimento bacteriano (fases lag, exponencial e estacionária) obtidas por OD e CFU.
A Curva de Crescimento sob Restrição Extrema
No desenho experimental, as amostras de $1g de regolito MMS-2 previamente tratadas termicamente a 150ºC (para zerar o sinal de DNA inicial) foram colocadas em placas de Petri de duplo compartimento. O reservatório de hidratação continha soluções salinas saturadas para estabilizar a humidade do ar (e consequentemente o regolito) via headspace. As amostras foram incubadas a 30ºC em gradientes de aw = 1; 0,75; 0,65; 0,34 e 0,12
 Imagem 3. Curva de crescimento de DNA de Bacillus subtilis em MMS-2 inoculado versus microbioma natural em MMS-2. As curvas mostram o DNA total extraído de 500 ± 20 mg de regolito. O MMS-2 inoculado começou com 0,91 ng e atingiu o pico no Dia 3, enquanto o MMS-2 não inoculado começou abaixo do limite de detecção e atingiu o pico no Dia 15. O DNA de B. subtilis no MMS-2 inoculado caiu para níveis próximos aos iniciais até o Dia 15. O MMS-2 inoculado com aw = 0,80 não apresentou crescimento após o Dia 1. As curvas representam as médias de três réplicas; as áreas sombreadas indicam o erro padrão. Os rendimentos normalizados pela massa (ng g⁻¹) estão apresentados nas tabelas suplementares S1–S2. Fonte: Raghavendra, J.B., Zorzano, M. & Martin‑Torres, J. (2026)
Os resultados revelaram uma dinâmica de crescimento típica, caracterizada por um prolongamento severo da fase lag à medida que a atividade de água diminuía:
- aw = 1, o pico de dsDNA da microbiota nativa ocorreu no dia 15 (alcançando 6,42 ng)
- aw = 0,75 e $0,65, as curvas de DNA atingiram o pico após 20 e 30 dias, respectivamente
- aw = 0,34 (induzido por solução saturada de MgCl2), os pesquisadores identificaram um pico estatisticamente significativo de dsDNA no dia 30 (alcançando 2,10ng no laboratório e 1,68ng sob validação estrita em sala limpa ISO Classe 5.
Para garantir a confiabilidade dos dados, os testes a aw = 0,34 foram confrontados com um controle negativo mantido a aw = 0,12 (cloreto de lítio), que apresentou zero sinal detectável de DNA durante os 60 dias de experimento. A comparação de pico de DNA no dia 30 na sala limpa revelou significância estatística robusta (p = 0,0098; Benjamini-Hochberg FDR q = 0,0153)
O Efeito de Sais Adicionais
O estudo também avaliou o impacto de misturar 5% de sulfato de magnésio (MgSO4) ao regolito. Sob uma atmosfera saturada, este sal hidratado aumentou dramaticamente a absorção de água, retendo humidade equivalente a 50% do peso seco do próprio solo.
 Imagem 4. Absorção de água pelo MMS-2 com e sem 5% de MgSO₄ a 100% de UR (umidade relativa), a partir de 500 ± 20 mg de regolito. (a) Gráfico de barras indicando a massa de água absorvida em diferentes períodos de incubação por 1 g de MMS-2 (contendo 2–4% de CaSO₄, conforme incluído na formulação comercial) com 0 ou 5% (p/p) de MgSO₄. Ao final de 60 dias de incubação, ~0,5 g de água foi absorvido pelo MMS-2 com 5% de MgSO₄, metade da massa do volume inicial de solo. (b) Imagens das placas de Petri mostrando a absorção de água. O regolito puro absorveu quantidades mensuráveis de água apenas a 100% de umidade relativa (UR). Em níveis mais baixos de atividade de água, o solo permaneceu seco, sem alterações significativas de massa observadas. (c) A fase de latência na presença de 5% de MgSO₄ é de cerca de 30 dias, e a quantidade máxima de DNA extraído foi metade daquela (~3,2 ng) obtida do MMS-2 sem adição de sal (~6 ng). As curvas de crescimento representam a média de três réplicas para cada ponto de dados, e a área sombreada indica o erro padrão calculado. O rendimento total de DNA (ng g⁻¹) é apresentado na tabela S3 (tabela suplementar). Fonte: Raghavendra, J.B., Zorzano, M. & Martin‑Torres, J. (2026)
No entanto, em vez de favorecer a microbiota, a alta concentração iônica e a toxicidade do sal atuaram como um estressor severo: a fase lag foi estendida para longos 30 dias, e o pico de DNA acumulado no dia 45 foi de apenas ~3,2ng, metade do rendimento obtido no solo sem sal a aw = 1.
Confirmação Visual e Sequenciamento de Terceira Geração
Para consolidar as evidências de replicação biológica ativa, a equipe utilizou duas abordagens de ponta:
1. Microscopia Confocal de Varredura a Laser: Utilizando o corante fluorescente de alta afinidade Hoechst 33342, os cientistas visualizaram células bacterianas intactas e metabolicamente ativas nas amostras cultivadas a aw = 0,34. Observou-se uma redução marcante no tamanho celular, uma conhecida resposta adaptativa ao estresse osmótico e à dessecação.
2. Sequenciamento de Terceira Geração (Oxford Nanopore): Utilizando células de fluxo Flongle R10.4.1, a análise metagenômica revelou que o crescimento foi dominado pela microbiota nativa e adaptada do deserto do Mojave. Em contrapartida, cepas puras de laboratório, como o Bacillus subtilis (utilizado como controle positivo), falharam completamente em se replicar em ambientes com aw <= 0,80.
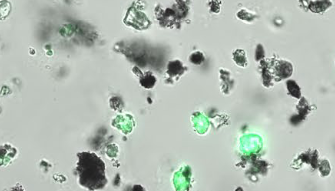
 Imagem 5. Imagens de microscopia de fluorescência das amostras de solo em diferentes atividades de água. O dia 0 refere-se ao solo coletado após o tratamento térmico, e as células em 1 aw, 0,75 aw, 0,65 aw e 0,34 aw foram coletadas nos dias 10, 15, 25 e 30, respectivamente. O sobrenadante do solo contendo as células foi incubado com 5 μM do corante Hoechst 33342 por 15 min à temperatura ambiente. As imagens foram obtidas utilizando microscopia confocal Zeiss LSM880 com aumento de 100x, em modo de campo claro e excitação a 488 nm (canal Alexa Fluor 488), e representam duas replicatas. As imagens foram editadas utilizando o software Zeiss Zen 3.10, e uma barra de escala de 10 μm é indicada. Fonte: Raghavendra, J.B., Zorzano, M. & Martin‑Torres, J. (2026)
Implicações Críticas para a Proteção Planetária
Do ponto de vista astrobiológico e de engenharia aeroespacial, estes resultados geram um alerta de alta prioridade. Eles indicam que sistemas rocha-micróbio conseguem mobilizar e conservar microhumidade local em níveis suficientes para ultrapassar limites teóricos de replicação celular em nichos tradicionalmente classificados como estéreis ou secos.